
前回、「氷の下で眠るマリモの危機と復活 ―世界に散らばるマリモ、湖底に眠るマリモの記憶③前半」の続きです。前半は主に手法について解説しました。後半は結果の解説。そして考察です。
🟢 補正前の数字だけを見ると、むしろ逆に見える
さて、ここでいったん、補正する前のデータを見てみましょう。驚くことに、補正前のマリモDNAフラックスは、1900年以前の古い層では比較的低く、1950年代以降に多くなるように見えました。この時期、湖の栄養状態にも大きな変化がありました。研究チームは泥に含まれる「全リン」と「藻類色素」*7も測定しています。全リンは湖の富栄養化を考える手がかりです。クロロフィルaやその分解産物などの藻類色素は、湖で藻類がどのくらい生産されていたかを推定する指標になります。
論文の図3Aを見ると、1900年以前は全リンと藻類色素の堆積フラックスが低く、阿寒湖は栄養塩の少ない「貧栄養的な湖」だったと推定されます。その後、20世紀に入ると両者は徐々に増え始め、1950年以降に高い水準に達しました。これは観光開発が進んだ時期と重なります。1980年代半ばに下水道が整備されると全リンのフラックスは低下傾向を示しましたが、藻類色素の指標は高い状態が続きました。
図3Bにはマリモの18S rRNA遺伝子、図3Cにはマリモに関連するシアノバクテリアの23S rRNA遺伝子について、測定値と補正後の値が描かれています。測定値だけを見ると、マリモに関係するDNAも、富栄養化が進んだ時代に増えてきたように見えるのです。
しかし、これをそのまま「マリモは昔より今の方が多い」と解釈してよいのでしょうか。古い泥ではDNAが分解されているかもしれない、という問題を、ここでも忘れてはいけません。
*7 富栄養化の指標:ここで測られた全リンや藻類色素は、現在の湖水の濃度そのものではなく、「各年代の堆積物にどれくらいの量が堆積したか」を表すフラックスです。これらの変化から湖の過去の栄養状態を推定していますが、数値をそのまま当時の水質濃度に読み替えることはできません。
🟢 補正すると現れた、まったく違う歴史
ミジンコから推定したDNAの分解補正を、マリモのDNAに適用すると、見えてくる歴史が大きく変わります。
Urabe et al. (2025) は、20世紀初頭より前の補正後のマリモDNAフラックスが、現在に比べておよそ10〜100倍*8に相当したと推定しました。研究チームはそこから、当時の阿寒湖には、現在よりはるかに多くのマリモが生育していた可能性が高いと考えています。そして、その量は20世紀前半に大きく減ったと解釈しました。補正前は「昔は少なく、近年増えた」ように見えていたのに、補正後は「昔は豊富で、20世紀前半に減った」という、ほとんど逆の歴史になるのです。
ただし、ここで「昔のマリモが正確に10〜100倍の重量だった」と受け取るのは適切ではありません。研究チームが比較したのは、DNAの分解と堆積を考慮した指標であり、湖全体のマリモを昔から直接計量したものではないからです。
それでも、この研究が示す「昔の方がずっと豊富だった」という大きな傾向には、複数の根拠があります。別の補正モデルを使っても、20世紀初頭より前のDNA指標が現在より大きくなる傾向は保たれました。しかも、後で紹介する昔の研究者の観察記録とも、おおむね一致したのです。
*8 「10〜100倍」という推定の中身:これは、ミジンコのDNAと後腹部爪から分解補正係数を推定し、マリモ由来のDNAフラックスを補正したときの、過去と現在の相対的な違いを表す概数です。研究チームは別の統計モデルによる補正も比較しています。ただし、各年代のDNA測定、年代推定、分解補正のモデル、DNAが泥へ届く過程、遺伝子コピー数と生物量の関係などに不確実性があります。論文中の95%信頼区間は主として統計モデルによる補正係数の幅を示すもので、これらすべての不確実性を含む「湖全体のマリモ重量の95%信頼区間」ではありません。
🟢 マリモと一緒に見つかった、シアノバクテリア
もうひとつ、今回の研究で注目したい生物がいます。マリモの糸状体に関連して見つかった、シアノバクテリア*9です。シアノバクテリアは、酸素を出す光合成を行う細菌の仲間で、日本語では「藍藻(らんそう)」や「藍細菌(らんさいきん)」とも呼ばれます。
研究チームは、生きたマリモからシアノバクテリアを採取し、その23S rRNA遺伝子の一部を目印として、湖底堆積物のDNAも調べました。遺伝子配列からネンジュモ目に属することは示唆されましたが、種まで特定されたわけではありません。補正前のシアノバクテリアDNAは、マリモDNAと同じく、1950年代以降に増えたように見えました。もし富栄養化によって増えた浮遊性のシアノバクテリアなら、それだけでも説明できるかもしれません。
ところが分解を補正すると、シアノバクテリアDNAも、富栄養化以前の時代に多かったと推定されました。富栄養化で増えるはずの浮遊性シアノバクテリアなら、富栄養化以前の方が多かったという結果は説明しにくくなります。そこで研究チームは、今回追跡したシアノバクテリアが浮遊性のものではなく、マリモに関連した種に由来すると考えています。
マリモのDNAだけでなく、別の生物のDNAからも似た歴史が見えた。これは興味深い点です。もっとも、両者の補正には同じミジンコ由来の補正係数を使っているため、補正後の傾向が似ていることを完全に独立した証拠とまではいえません。また、シアノバクテリアの暮らし方やマリモとの関係まで、DNAの推移だけで確定できるわけではありません。
*9 「共在」と「共生」:原著論文ではマリモに関連するシアノバクテリアを「symbiotic cyanobacteria」とも表現していますが、今回のDNA断片だけで相互の利益関係まで実証されたわけではありません。また、調べた23S rRNA遺伝子の一部は既知種の配列と明確に一致せず、分類学的な位置づけには不明な点が残ります。そのため本記事では、主に「マリモに関連する」と表現しています(プレスリリースでは「共在藍細菌」と呼んでいます)。
🟢 阿寒湖のマリモは、なぜ減ったのか?
では、20世紀前半にマリモが減ったとすれば、何が起きたのでしょうか。ここからは、DNAの分析結果に、阿寒湖周辺の歴史を重ねて考えていきます。
1910年代には、牧場の造成や製紙用の木材を得るために、阿寒湖周辺の森林が大きく伐採されました。森林が減ると、雨によって土砂が流れ出しやすくなります。湖に泥水が流れ込めば水が濁り、湖底に届く光が弱くなります。光合成によって生きるマリモには、不利な条件です。
さらに1920年代前半以降、湖の下流に建設された水力発電所の影響で、阿寒湖の水位が繰り返し低下したとされています。水位が下がれば、浅い場所のマリモが岸辺に取り残され、乾燥する危険が高まります。
こうした歴史的な出来事と、補正後のマリモDNAフラックスの減少時期は、おおむね重なっていました。
しかも、昔の観察記録も同じ方向を示しています。生態学者の吉井義次氏(東北帝国大学教授、日本生態学会初代会長)は、20世紀初頭にたびたび阿寒湖を訪れ、複数の湾で豊富なマリモを記録しました。それが1950年代には、主な生育場所がチュウルイ湾に限られる状態になっていたと報告されています。泥に残ったDNAから復元された傾向は、こうした現地観察の記録とも整合的でした。
ただし、ここは重要な区別です。DNA分析によって過去の増減が推定されたことと、「伐採や水位操作が何割の減少を引き起こしたか」が実験的に証明されたことは、同じではありません。森林伐採と水位変動は、発生時期と生態学的な仕組み、過去の観察記録から考えられる有力な原因(吉井氏自身も1956年の報告で、この二つを主な原因に挙げています)ですが、今回の研究だけで寄与率や因果関係が定量的に決まったわけではないのです*10。
*10 歴史的な出来事と原因の推定:今回の研究は、実験によって土砂流入や水位変動の影響を切り分けたものではありません。堆積物DNAから推定した個体群の変化を、過去の土地利用・湖の管理状況・生態学的な知見と照らし合わせ、説明として整合的な原因を議論しています。時期が一致することは重要な証拠ですが、それだけで単独の原因と断定することはできません。
🟢 森林や水位が戻っても、マリモは簡単には戻らなかった
阿寒湖周辺の大規模な森林伐採は1950年ごろまでには収まり、その後、前田一歩園財団の前身から続く森林管理や植林などの取り組みによって、森林の回復が進められてきました。現在も同財団は、阿寒湖周辺の森林を、かつての原生林に近い姿へと復元するための活動を続けています。水力発電所も1953年に停止し、湖の水位は比較的安定したとされています。
それなら、マリモは元の豊かな状態に戻ったのでしょうか。研究結果は、そう単純ではなかった可能性を示しています。1950年代以降、阿寒湖では観光開発が進み、湖畔には温泉街や宿泊施設が増えました。当時は生活排水などが湖へ直接流れ込んでおり、湖への栄養塩の供給が増えました。栄養塩が多くなれば、水中の植物プランクトンなどが増え、光が湖底まで届きにくくなることがあります。
湖底で光合成するマリモにとって、これは成長を妨げる可能性のある変化です。研究チームは、20世紀前半の減少の後、森林や水位の条件が改善してもマリモが十分に回復しなかった背景として、1950年代以降の富栄養化が関わっていた可能性を指摘しました。そのうえで、もしそうであれば、マリモを守るにはリンの水準を1950年以前の状態まで戻す必要がある、と提言しています。
1986年には下水道の整備により、直接的な生活排水の流入は解消したとされています。堆積物の全リンの指標にはその後の低下傾向が見られますが、藻類色素は高い状態が続きました。湖の栄養環境や生態系は、負荷を減らせばすぐに元に戻る、という単純なものではないのかもしれません。
つまり、阿寒湖のマリモの歴史は、「ひとつの悪い原因があり、それがなくなれば元に戻る」という物語ではありません。時代によって異なる環境変化が重なり、マリモの生育条件を変えてきた可能性があるのです。
🟢 最近のマリモにも、まだ心配な兆候がある
研究チームは、2000年以降のマリモDNAフラックスにも減少傾向が見られることを指摘しています。これも堆積物から得られた指標であって、現存する球状マリモを毎年すべて数えた結果ではありません。それでも、現在進行形の変化を考えるうえで気になる兆候です。
背景として原著論文が挙げているのは、湖岸近くでの水草の拡大、水温上昇に伴う呼吸代謝の増加、冬の結氷期間の短縮によって受けやすくなる強い光(論文中では「紫外線」と表現)の影響、強い波で岸へ運ばれたマリモが乾燥する危険などです。これらは、今回の堆積物DNA分析だけで原因と確定されたものではありません。別の研究で示されている知見を踏まえた、今後注意すべき要因の候補です。
ただ、こうした話題は、この連載全体とも深くつながっています。マリモは、湖底に届く光だけでなく、水温、冬の氷、波、岸辺の環境など、いくつもの条件に支えられて生きています。ひとつの条件が変わったとき、ほかの条件との組み合わせで何が起きるのか。その理解が、今後の保全には欠かせません。
🟢 この研究が変える、「守るべき基準」
私は、今回の研究の意義は、単に「昔のマリモはどのくらいいたか」を推定したことだけではないと思います。私たちが何を基準にマリモを守ろうとするのか、その考え方にも関わっているからです。
今の阿寒湖に残っているマリモを見て、「これが普通の状態だ」と考えてしまうと、保全の目標も「今あるものを減らさずに守る」ことに限られがちです。しかし、もし昔の阿寒湖に今よりはるかに多くのマリモが生育していたのなら、現在の状態は、長い減少の歴史を経た後の姿なのかもしれません。
自然環境を守るとき、私たちはどうしても、自分が見てきた時代を「普通」と考えてしまいます。ところが、その時点ですでに自然が大きく変わっていることもあります。過去の環境を知ることは、そうした思い込みを見直す助けになります。
もちろん、昔の阿寒湖をそのまま再現できるわけではありません。観光地としての阿寒湖の現在もあり、気候や土地利用も変わっています。さらに今回の10〜100倍という数値そのものには、先に述べた推定上の幅と限界があります。
それでも、「現在見られるマリモの量が、阿寒湖本来の豊かさをすべて表しているとは限らない」という問いは、保全の目標を考えるうえで重みがあります。湖底の泥は、私たちが生まれるよりずっと前の阿寒湖を知るための、貴重な手がかりなのです。
🟢 研究で分かったことと、まだ分からないこと
ここまでの話を、少し整理しておきましょう。今回、研究チームが直接測定したのは、湖底堆積物に含まれるマリモの遺伝子断片、ミジンコの遺伝子断片と後腹部爪、リンや藻類色素などです。それらに年代測定と統計モデルを組み合わせて、マリモの過去の増減を推定しました。
その結果、DNAの分解を考慮しない場合と、考慮した場合では、過去の姿が大きく変わることが示されました。補正後の結果は、20世紀初頭以前の方がマリモに由来するDNA指標が高かったことを示し、昔の観察記録ともよく合いました。
一方で、慎重に読んでおきたい点*11もあります。今回詳しく解析された堆積物コアは、湖の中央付近の深い地点で採られた1本です。泥がどこから運ばれたか、マリモがどれほどDNAを放出したか、泥の中でどの程度分解されたか――そのすべてを昔にさかのぼって直接測定することはできません。
とくに、ミジンコとマリモでは細胞の構造が異なり、DNAの保存されやすさが同じとは限りません。ミジンコ由来の補正係数をマリモに用いることは、重要な仮定です。論文でも、この点は方法上の限界として述べられています。将来、珪藻や花粉のように、植物や藻類に由来し、殻や外壁が化石として残るもののDNAと遺骸を組み合わせれば、補正方法をさらに改良できるかもしれません。
また、10〜100倍という推定は、湖全体の球状マリモを昔から数え続けた「実測値」ではありません。正確な過去の総重量や、各湾に何個の球状マリモがあったかまでは分かりませんし、減少の原因をひとつに特定したわけでもありません。
だからといって、研究の価値が小さくなるわけではありません。むしろ、残りにくい生物の歴史を調べるために、何を直接測り、何を仮定し、どこに不確実性があるかを示しながら、これまで届かなかった過去へ近づいたことに意義があります。
*11 今回の研究の主な不確実性:①堆積物コアが1本であること、②湖内のDNAの移動・堆積が時代によって変わり得ること、③遺伝子コピー数がマリモの重量と1対1に対応しないこと、④ミジンコとマリモのDNA保存性が異なり得ること、⑤年代推定や補正モデルに幅があること、が挙げられます。研究者は統計モデルの比較と歴史資料との照合で結果の妥当性を検討していますが、これらの条件をすべて取り除いた「正確な個体数」を得たわけではありません。
🟢 湖底に残された、静かな警告
阿寒湖のマリモは、今も湖底で生きています。しかし、その湖底に積もった泥を少しずつ調べていくと、私たちが今見ている阿寒湖だけでは分からない、長い変化の歴史が見えてきます。
昔は今よりずっと多くのマリモがいたかもしれないこと。20世紀前半に、その豊かさが大きく失われたと考えられること。そして森林や水位が回復しても、マリモが簡単には元の状態に戻らなかった可能性があること。これらは、湖底に残されたDNAと、ミジンコの小さな爪、過去の観察記録を組み合わせて見えてきた姿です。
もちろん、すべてが確定したわけではありません。それでも今回の研究は、マリモの過去を考えるための新しい物差しを、私たちに手渡してくれました。
丸くて愛らしいマリモは、同時に、湖の光環境や水位、森林、栄養状態、冬の氷などの変化を受けながら生きてきた藻類でもあります。湖底の泥に残された小さなDNAの断片は、その歴史を静かに伝えているのです。
さて、ここまででマリモの世界分布、学名の歴史、そして湖底のDNAが教えてくれる阿寒湖の過去を見てきました。続く後編では、マリモ自身の不思議に戻ります。マリモはどうやって増え、波のある湖底でどのように丸い姿をつくり、保っているのでしょうか。そして、大きな球状マリモの内部では、何が起きているのでしょうか。次回は、そのしくみに迫ります。
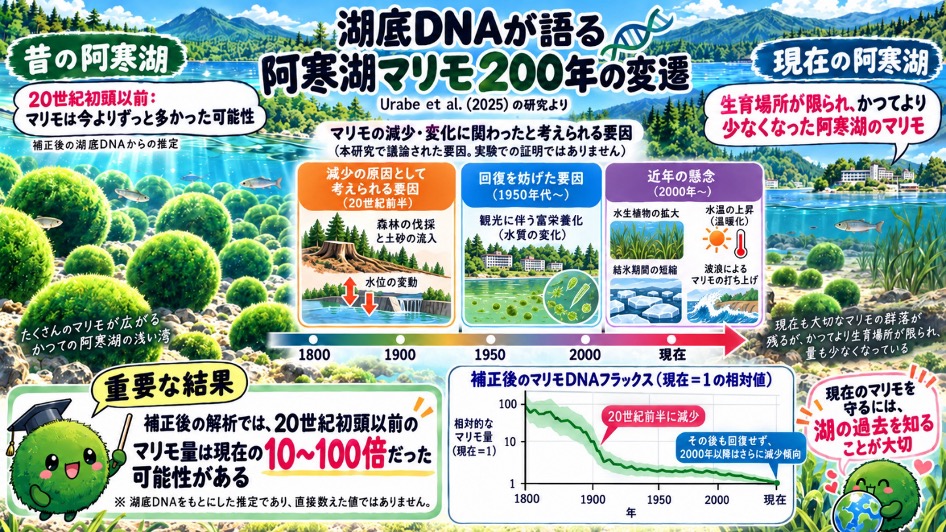
湖底堆積物に残るDNAの解析から、阿寒湖のマリモは20世紀前半に大きく減少し、その後も回復しないまま、2000年以降はさらに減少傾向にあると推定されました。DNAの分解を補正した解析では、20世紀初頭以前のマリモの量(DNAから推定した相対的な量)は、現在の10〜100倍だった可能性があります。論文では減少の背景として、20世紀前半の森林伐採による土砂の流入と水位の変動、1950年代以降の富栄養化による回復の妨げなどが議論されています。
(※Urabe et al. (2025) の研究結果をもとに、生成AIで作成した模式的なグラフィカル・アブストラクトです。湖の風景やマリモの様子、グラフの数値・曲線は模式的に描いたもので、実際の観察記録や測定データとは異なります。正確な内容は、本文の解説および原著論文の図3をご確認ください。)
あとがき
前半パート冒頭でご紹介した映画『ちいかわ』ですが、どうやら何度も映画館に足を運んでいるファンもいるようです。中には8回も観たという人がいるとか。すごいです。
映画を観終わってから、あらためて登場キャラクターについて調べてみました。ちいかわ、ハチワレ、うさぎ……。モモンガってそんな秘密があったのね……。
そういえば、映画に登場する島の住民たちは、顔がはっきりと描かれていません。これは、ちいかわたち主要なキャラクターと、それ以外の存在との境界を強調する演出だったのでしょうか。考えてみれば、島を訪れたちいかわたちの方が、本来は「よそ者」のはずなのですが……。
ホラー映画だと思うと、そのような構図は活きてきます。
それでは、また次回。